Vertical variability of phytoplankton in the Southern Ocean-Indian sector revealed by satellite and BGC-Argo data

  • WU Yize ,
  • HU Qiwei , * ,
  • WU Fang ,
  • WANG Zhengping ,
  • XIE Rui ,
  • HUAN Yu
Expand
  • School of Marine Technology and Geomatics, Jiangsu Ocean University, Lianyungang 222005, China

Received date: 2025-09-19

  Revised date: 2025-12-08

  Online published: 2026-06-25

Abstract

The vertical structure of phytoplankton is key to understand the biological carbon pump in the Southern Ocean-Indian sector. This study systematically analyzed the seasonal and interannual variability in the vertical distribution of chlorophyll a (Chl a) and phytoplankton carbon biomass (Cphyto) and their environmental drivers in this region, using satellite observations, BGC-Argo floats, and reanalysis data (2015-2018), with a focus on the 2015/2016 El Niño event. Results showed that Chl a was mainly distributed in the upper 0-100 m, with a pronounced subsurface chlorophyll maximum layer (SCML) at 10-100 m. Seasonal variability was significant: during austral summer (Dec-Feb), sufficient light (PAR>100 μmol·m-2·s-1) supported peak Chl a and Cphyto in the upper 0-100 m [ρ(Chl a)>0.75 mg·m-3, Cphyto>20 mg·m-3). In austral winter (Jun-Aug), reduced light availability and a deeper mixed layer collectively led to the dissipation of the SCML and the lowest annual values of Chl a and Cphyto [ρ(Chl a)<0.5 mg·m-3, Cphyto<10 mg·m-3]. The deepening of the mixed layer extended the vertical distribution of Chl a to approximately 200 m, whereas the vertical structure of Cphyto showed no corresponding significant change, leading to a pronounced decoupling between Chl a and Cphyto in the 0-200 m. During the 2015/2016 El Niño, enhanced Ekman pumping shoaled the thermocline, increasing nutrient supply to the euphotic zone and intensifying and prolonging the summer phytoplankton bloom [ρ(Chl a)>1 mg·m-3, lasting about 7 months]. This study provides scientific support for accurately assessing the Southern Ocean’s carbon sink potential and predicting the impact of extreme climate events on the phytoplankton-driven carbon pump.

Cite this article

WU Yize , HU Qiwei , WU Fang , WANG Zhengping , XIE Rui , HUAN Yu . Vertical variability of phytoplankton in the Southern Ocean-Indian sector revealed by satellite and BGC-Argo data[J]. Journal of Marine Sciences, 2026 , 44(2) : 93 -102 . DOI: 10.3969/j.issn.1001-909X.2026.02.010

0 引言

浮游植物作为海洋生态系统的初级生产者,在全球碳循环中扮演着关键角色[1-3]。它们通过光合作用将大气中的CO2转化为有机碳,形成“生物泵”效应,不仅支撑了上层海洋的食物网,还通过颗粒有机碳沉降,将其输送到深海,实现长期碳封存[2-3]。浮游植物的垂向分布和生产力受光照、营养盐和温度等多种环境因子的调控。多因子相互作用导致的季节性垂直变化,是影响大气CO2含量和海洋碳汇能力的重要机制[4]。
南大洋-印度洋扇区地处南半球西风带核心区,紧邻南极绕极流区,是全球海-气CO2交换的关键区域之一[3]。在南极绕极流和强盛西风共同作用下,该区域上升流过程显著,营养盐供给充足,为全球碳汇潜力最高的海域之一[1-4]。此外,受南极绕极流、海冰季节变化以及厄尔尼诺-南方涛动(ENSO)等多重因素调节,该海域浮游植物的垂直分布与碳汇能力表现出明显的季节和年际变化,深刻影响南大洋碳循环过程[2,5-6]。
卫星遥感技术的快速发展为实现南大洋大范围连续的浮游植物叶绿素a(Chl a)监测提供了重要手段[5-7],但其观测深度有限,难以揭示混合层以下浮游植物的垂直特征。近年来,生物地球化学剖面浮标(Biogeochemical-Argo, BGC-Argo)的广泛应用有效弥补了这一局限。该浮标凭借高分辨率剖面观测能力,逐步揭示出南大洋浮游植物垂向分布显著的区域复杂性与动态变化性[8-13]。例如,SU等[9]基于BGC-Argo数据揭示了中尺度涡旋对次表层Chl a分布的调制作用;最近多项基于BGC-Argo的研究证实,次表层叶绿素最大值层(subsurface chlorophyll maxima layer,SCML)在南大洋全年普遍存在[10-16]。与低纬度海域SCML的形成通常受营养盐-光照限制不同,南大洋SCML的形成机制更为复杂,常涉及硅藻聚集、海冰消退、涡流作用、俯冲事件和光驯化等多个过程[10-16]。其空间分布与垂直结构受光照、混合等多尺度海洋过程的显著调控,这种分布与结构可通过提升局部尺度的碳输出、初级生产力和高营养级能量供给[7-8]影响整个海域的碳汇潜力[10-12]。目前,在全球多个海域(如北太平洋、热带印度洋)已相继开展基于多平台观测的浮游植物垂直结构整合研究[17-18],并成功揭示了物理-生物耦合对SCML的影响。开展卫星遥感联合BGC-Argo观测,已逐渐成为海洋生态研究的共识。然而,在南大洋-印度洋扇区这一碳汇关键海域,现有研究多集中于表层Chl a时空变化[19-20],对浮游植物垂直结构的认知还存在明显不足。特别是,该海域 Chl a 与浮游植物碳生物量(phytoplankton carbon biomass,Cphyto)的垂直分布是否存在季节与年际尺度上的解耦行为,以及光照、温度、营养盐等环境因子如何协同调控垂直结构等关键科学问题,尚缺乏深入探讨。
为此,本研究整合卫星遥感与BGC-Argo浮标数据,分析南大洋-印度洋扇区浮游植物Chl a与Cphyto 垂直分布的时空变化特征和环境因子影响,阐明SCML的形成机制与维持条件;结合2015/2016年强厄尔尼诺事件,进一步探讨极端气候过程对该海域浮游植物垂直结构的影响。该研究可为改进生物地球化学模型参数化方案、增强南大洋碳汇功能和气候响应预测提供科学依据。

1 研究区域

本研究聚焦于南大洋-印度洋扇区(30°E—160°E,65°S—25°S,图1),北起副热带辐合带,南至南极大陆边缘,连接非洲南部、南印度洋与澳大利亚以南海域,是南大洋的核心组成部分。该区域受强劲西风带驱动,表层风速常年居高不下,垂向混合强烈,上升流显著,深层营养盐上涌活跃,形成了独特的水文环境[5,15-16]。在此动力背景下,该海域浮游植物呈现出极为显著的季节性特征:夏季(本文中的季节均指南半球)期间,光照条件增强,风驱动混合不断输送营养盐,促使浮游植物频繁爆发大面积水华。水华不仅显著提升了海洋初级生产力,支撑了从磷虾到高等捕食者的复杂食物网[3];同时还通过“生物泵”效应将大量碳输出至深海,对南大洋乃至全球生态系统结构与碳循环过程产生深远影响。这使南大洋成为研究海洋对气候变化响应的重要热点区域。
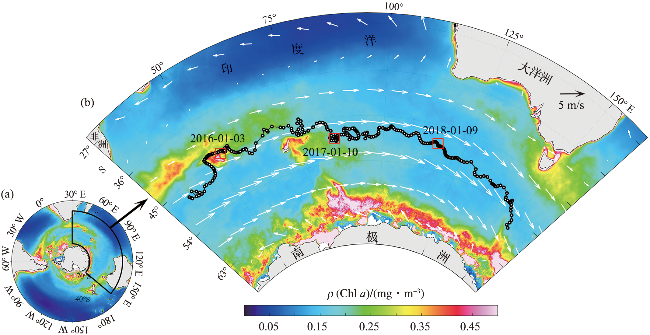
图1 南大洋-印度洋扇区研究范围及Chl a质量浓度空间分布(2015—2018年平均值)

(图a中的黑色框线区域为本文研究区域。图b中的黑色线与圆圈表示BGC-Argo浮标轨迹,白色箭头表示风场分布。)

Fig. 1 Study area in the Southern Ocean-Indian Ocean sector and spatial distribution of Chl a mass concentration(average value from 2015 to 2018)

(The area within the black frame line in Fig.a represents the study region. Black lines and circles in Fig.b represent the trajectories of BGC-Argo floats, and white arrows represent wind field distribution.)

2 数据与方法

2.1 观测及再分析数据

本研究使用的BGC-Argo浮标数据(浮标编号:6901583)来源于BGC-Argo数据中心(https://biogeochemical-argo.org/)。该浮标搭载的传感器可测量温度、盐度、叶绿素a质量浓度[ρ(Chl a)]、光合有效辐射(photosynthetically active radiation,PAR)、700 nm颗粒后向散射系数[particle backscattering coefficient at 700 nm,bbp(700)]及硝酸盐等多个关键环境参数。该浮标于2015年4月布放于爱德华王子群岛附近海域,随后大致沿南大洋西风漂流带自东向西移动(图1b),持续工作至2018年11月,期间共获取314条经质量控制的有效剖面。剖面的采样时间间隔为4天,垂向分辨率在0~200 m水层范围内约为0.2 m。
本研究使用的海表叶绿素a质量浓度卫星遥感数据来自GlobColour平台(http://globcolour.info/)。该平台集成了MODIS、VIIRS-SNPP & JPSS1以及OLCI-S3A & S3B等多源卫星传感器的观测结果。数据时间跨度为2015年1月—2018年12月,时间分辨率为月平均,空间分辨率为4 km。海表面风场数据来自哥白尼数据空间生态系统(Copernicus Data Space Ecosystem, https://dataspace.copernicus.eu/)。该数据集基于ECMWF ERA5再分析数据形成,并结合Metop-A/B/C、ASCAT、QuikSCAT、SeaWinds、ERS-1/2等多源卫星观测资料进行了校正。数据时间范围同样为2015年1月—2018年12月,时间分辨率为月平均,空间分辨率为0.25°。
本文使用月平均多变量ENSO指数(multivariate ENSO index, MEI)指示ENSO事件的发生。该数据由美国国家海洋和大气管理局物理科学实验室(NOAA Physical Sciences Laboratory, https://psl.noaa.gov/enso/mei/)提供。MEI指数是通过对海平面气压、海表温度、海表经向风和纬向风以及向外长波辐射这五个变量进行融合分析得到的。本文所使用数据的时间跨度为2015年1月—2018年12月。

2.2 数据分析方法

本文基于BGC-Argo提供的bbp(700)剖面数据计算Cphyto,以定量评估浮游植物固碳能力。其计算公式为[17]:
$\begin{array}{l} C_{\text {phyto }}=13000 \times[\operatorname{bbp}(443)-\operatorname{bbNAP}(443)]= \\ 13000 \times\left[\operatorname{bbp}(700) \times\left(\frac{443}{700}\right)^{Y}-\operatorname{bbNAP}(443)\right] \end{array}$
式中:bbp(443)和bbp(700)分别为443 nm和700 nm处的颗粒后向散射系数;bbNAP(443)表示非藻类颗粒物对bbp(443)的贡献,取固定值0.000 35 m-1; Y为颗粒物后向散射系数的光谱斜率,取值-1[17]。
通过阈值法处理温度和盐度数据,分别确定混合层和温跃层深度。混合层深度定义为温度较表层下降0.2 ℃时所在深度,温跃层深度定义为5 ℃等温线所处的深度。
埃克曼抽吸速度(Ekman pumping velocity,EPV)根据下式进行计算[18,21]:
$\mathrm{EPV}=\frac{1}{\rho_{\mathrm{w}} f}\left[\frac{\partial\left(\tau_{y}\right)}{\partial x}-\frac{\partial\left(\tau_{x}\right)}{\partial y}\right]$
式中:τx表示经向风应力;τy表示纬向风应力;ρw为海水密度,取值1.025×10³ kg·m-3;f为科氏力参数。

3 结果

3.1 南大洋-印度洋扇区Chl a及Cphyto的季节变化
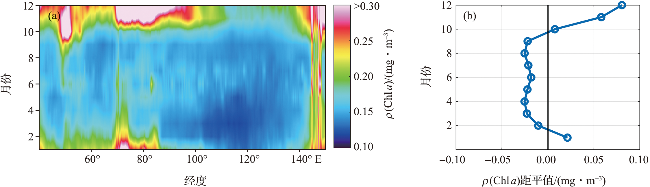
在水平分布上,遥感观测结果显示Chl a质量浓度呈现出显著的季节性变化特征(图2)。夏季(12月—次年2月),研究区域内浮游植物大量增殖,表层Chl a质量浓度平均值达到全年最高值(>0.25 mg·m-3,图2a),尤其在50°E—100°E经度范围内形成了一条连续的高质量浓度带(平均值>0.30 mg·m-3),12月Chl a质量浓度的距平值达到0.08 mg·m-3(图2b)。而在其余三季,Chl a质量浓度相对较低,表层平均值普遍介于0.1~0.2 mg·m-3(图2a),距平值约为-0.025 mg·m-3(图2b)。
图2 南大洋-印度洋扇区气候态月平均海表Chl a质量浓度的时间-经度分布(a)以及月份距平值(b)

Fig.2 Time-longitude evolution of climatological mean monthly sea surface Chl a mass concentration (a) and its monthly anomaly (b) in the Southern Ocean-Indian Ocean sector

在垂直分布上(图3),Chl a 与 Cphyto 在 10~100 m 深度范围内显著增加,Chl a质量浓度平均值维持在 0.3~0.8 mg·m-3,形成了明显的次表层叶绿素最大值层(Chl a质量浓度平均值>0.6 mg·m-3),Cphyto平均值保持在 10~20 mg·m-3;相比之下,在100 m以下水层,浮游植物生产力显著降低(图3a和3c)。夏季,浮游植物爆发可延伸至 100 m 水层,Chl a质量浓度与Cphyto平均值均达到全年最高水平(Chl a质量浓度平均值>0.75 mg·m-3,Cphyto平均值>20 mg·m-3);冬季,该区域浮游植物处于全年最低水平,Chl a质量浓度平均值(<0.5 mg·m-3)和Cphyto平均值(< 10 mg·m-3)均降至全年最低(图3)。其中,Chl a质量浓度和Cphyto的显著下降主要发生在10~100 m水层:Chl a质量浓度平均值从夏季的约 0.8 mg·m-3 降至冬季的约0.4 mg·m-3,Cphyto平均值从夏季的约25 mg·m-3 降至冬季的约5 mg·m-3(图3b和3d)。值得注意的是,冬季 Chl a分布深度可延伸至200 m左右,从6月开始,100~200 m水层Chl a显著增加(图3b),而Cphyto则从7月开始逐渐增加(图3d), 较Chl a滞后1个月。春季和秋季则呈现典型的过渡期特征。春季为浮游植物生长启动阶段,在 0~100 m水层中,Chl a质量浓度和 Cphyto 均呈逐月上升趋势:Chl a质量浓度平均值从冬季的约 0.4 mg·m-3上升至春季的约 0.8 mg·m-3,Cphyto平均值由冬季的约5 mg·m-3 上升至春季的约15 mg·m-3(图3b和3d)。秋季则反映了从高生产力期向衰退期的转变:在0~100 m水层中,Chl a质量浓度平均值由夏季的约 0.8 mg·m-3 缓慢下降至秋季的约0.5 mg·m-3,Cphyto平均值从夏季的约 25 mg·m-3 降至秋季的约10 mg·m-3(图3b和3d)。
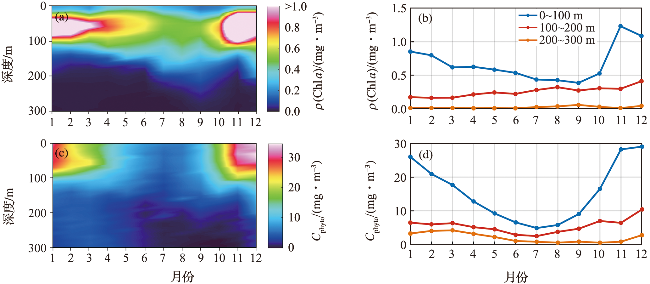
图3 南大洋-印度洋扇区Chl a质量浓度(a,b)和Cphyto(c,d)的垂向分布及不同深度层均值的季节变化

Fig.3 Seasonal variations of vertical and depth-averaged distribution of Chl a mass concentration (a, b) and Cphyto (c, d) in the Southern Ocean-Indian Ocean sector

3.2 南大洋-印度洋扇区Chl a及Cphyto的年际变化

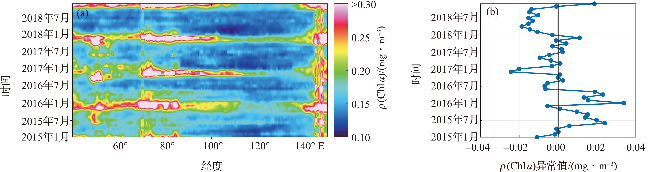
遥感观测显示,2015—2018年研究区域Chl a质量浓度存在显著的年际变化。与2017—2018年相比,2015—2016年Chl a质量浓度明显偏高(图4a),表现为显著的正异常,其异常值范围为0.00~0.03 mg·m-3(图4b)。其中,2015—2016年夏季,Chl a质量浓度平均值最高可达0.3 mg·m-3(图4a),与2015—2018年多年月平均值相比,最大异常值达到0.03 mg·m-3(图4b)。
图4 2015—2018年南大洋-印度洋扇区海表Chl a质量浓度分布(a)与 Chl a质量浓度异常(b)

Fig.4 Sea surface Chl a mass concentration distribution (a) and Chl a mass concentration anomaly (b) in the Southern Ocean-Indian Ocean sector from 2015 to 2018

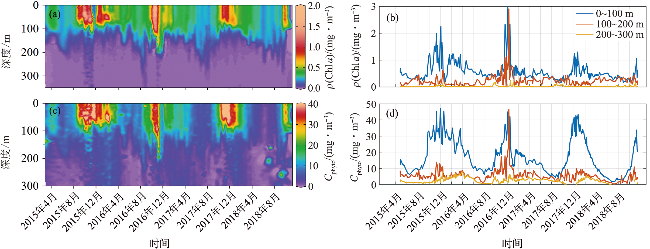
在垂直分布上,与2017—2018年相比,2015—2016年夏季研究区域0~100 m水层中的Chl a与Cphyto均出现了更强且持续时间更长的爆发现象(图5a和5c),浮标观测到的变化趋势与遥感观测结果一致。在0~100 m水层,2015年10月—2016年4月,Chl a质量浓度持续偏高(>1 mg·m-3,图5b),持续时间约7个月;2016年10月—12月,Chl a质量浓度在0~100 m 和 100~200 m 水层均显著升高(>1 mg·m-3,图5b)。Cphyto也呈现出相似的变化趋势,其高值可达20~50 mg·m-3(图5d)。
图5 2015—2018年南大洋-印度洋扇区Chl a质量浓度和Cphyto的垂向分布及不同深度层的均值变化

Fig.5 Vertical and depth-averaged distribution of Chl a mass concentration and Cphyto in the Southern Ocean-Indian Ocean sector from 2015 to 2018

3.3 南大洋-印度洋扇区水体环境因子变化

在南大洋-印度洋扇区,光照、温度、盐度及营养盐条件存在显著的年内差异,表现出强烈的季节性变化,其中以夏季和冬季差异最显著。夏季(12月—次年2月),0~100 m水层的光照强度达到全年最高水平(PAR均值>100 μmol·m-2·s-1,图6a和6b);伴随光照增强,水温也升至年度最高水平(均值>7 ℃,图6c和6d);盐度显著降低(均值<34.0, 图6e和6f);硝酸盐质量摩尔浓度降至全年最低水平(均值<24 μmol·kg-1,图6g和6h)。冬季(6月—8月),水体环境表现出与夏季截然不同的特征:光照时间缩短,0~100 m层的光照强度显著减弱(PAR均值<50 μmol·m-2·s-1,图6a和6b);水温降至全年最低水平(均值<7 ℃,图6c和6d);盐度逐渐增加(图6e 和 6f);硝酸盐质量摩尔浓度显著上升,达到全年最高水平(均值>24 μmol·kg-1,图6g和6h)。与夏、冬季的极端情况相比,春、秋季则表现为过渡状态:春季光照和水温从冬季低值逐步回升,秋季则从夏季高值逐渐回落;硝酸盐质量摩尔浓度的季节变化与光照和水温相反。
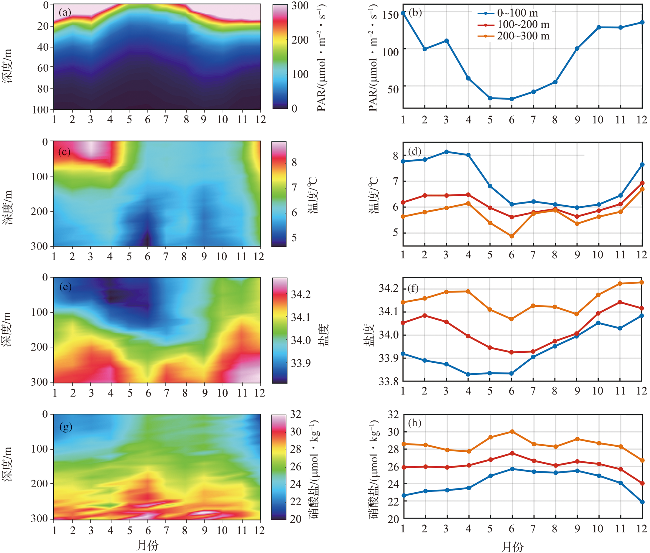
图6 南大洋-印度洋扇区PAR(a, b)、温度(c, d)、盐度(e, f)以及硝酸盐(g,h)的垂向季节变化特征

Fig.6 Seasonal variability in the vertical distribution of PAR (a, b), temperature (c, d), salinity (e, f), and nitrate (g, h) in the Southern Ocean-Indian Ocean sector

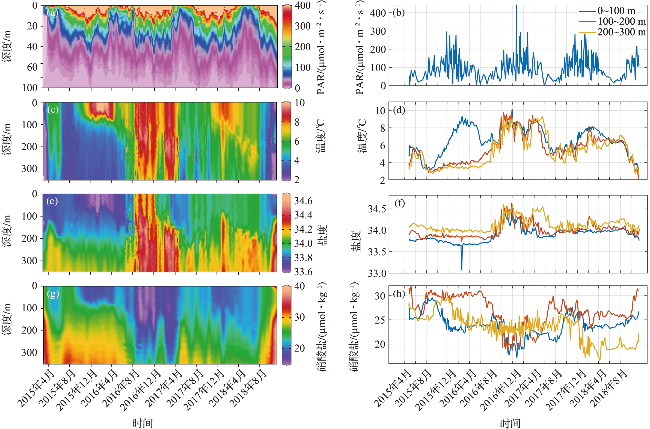
研究区域0~300 m层水体环境因子在年际尺度上表现出显著异常(图7):2016年8月—2017年8月,温度和盐度较前期明显上升,硝酸盐质量摩尔浓度显著下降。2015/2016年夏季(2015年12月—2016年2月),水温在0~100 m呈明显升高趋势,最高温度>8 ℃,而在100~300 m升高幅度较低,最高温度约为4 ℃(图7c和7d)。2015年4月—2016年8月,0~300 m层盐度呈持续下降的趋势,其中2015/2016年夏季,0~100 m盐度降至整个研究时段最低水平。
图7 2015—2018年南大洋-印度洋扇区PAR(a, b)、温度(c, d)、盐度(e, f)以及硝酸盐(g, h)的变化特征

Fig.7 Variation characteristics of PAR (a, b), temperature (c, d), salinity (e, f), and nitrate (g, h) in the Southern Ocean-Indian Ocean sector from 2015 to 2018

4 讨论

南大洋-印度洋扇区的光照、温度和盐度具有显著的季节变化特征(图6),是直接影响浮游植物时空分布动态的关键环境因子[1-2,4-5]。一方面,温度和盐度的变化会影响混合层深度,从而改变混合层内的光可用性,对浮游植物生长产生重要影响[7,21-22];另一方面,混合层变化也可调控真光层内营养盐的补充。此外,尽管南大洋海域硝酸盐含量总体较为充足,一般不构成浮游植物生长的主要限制因子,但其含量与浮游植物生物量呈负相关关系[23],因此可作为反映浮游植物变化的指标。鉴于上述环境因子的调控作用,本节将重点探讨该区域浮游植物垂向分布的季节及年际变化机制。
夏季(12月—次年2月),随着太阳直射点南移,研究区域光照强度逐渐增强,在0~100 m层,光合有效辐射达到全年最高水平(PAR均值>100 μmol·m-2·s-1,图6b),上层海洋层结稳定性增强,垂向混合作用减弱,深层的硝酸盐难以通过垂向混合作用向上补充(图6e和6f)。同时,适宜的光热条件促进了浮游植物生长[18-19],导致营养盐消耗增加,硝酸盐含量降至年内最低水平(图6g),Cphyto显著升高(图3)。冬季(6月—8月),PAR显著降低, 0~100 m层的PAR均值多降至 50 μmol·m-2·s-1以下(图6b),光照成为浮游植物生长的主要限制因子。同时,冬季混合层加深增强了水体的垂向混合作用,Chl a在混合层内呈现相对均匀的垂向分布,次表层叶绿素最大值层结构消失,Chl a质量浓度平均值下降,Cphyto降至全年最低水平(图3)。此外,冬季混合层加深可能导致0~100 m层中的Chl a向深层输送增加,即观测显示100~200 m层Chl a增加,而Cphyto未同步增加,两者出现明显解耦(图3)。有研究表明,浮游植物在弱光环境下可通过提高ρ(Chl a)∶Cphyto比值(单位细胞叶绿素含量)来增强光捕获能力,而非实现生物量的实质性增长[17],这与本文的结果一致。春季,随光照条件改善,温度逐步回升,浮游植物开始生长,并于夏季达到Cphyto峰值;秋季,光照与温度条件逐渐恶化,浮游植物进入衰减阶段。上述周期变化充分体现了南大洋-印度洋扇区浮游植物垂向分布对季节变化的响应。该结果修正了以往研究多聚焦于表层响应的认识,为理解海洋环境变化对海洋生态系统的影响提供了垂直维度上的新证据。
2015/2016年发生了较强的厄尔尼诺事件(MEI>1.0,图8a),其强度与1982/1983年和1997/1998年这两次历史性“超级厄尔尼诺”事件相当[24-25]。从2015年8月起,厄尔尼诺进入发展期,热带中太平洋显著的海表温度正异常通过改变沃克环流结构,激发了经向传播的罗斯贝波,进而影响热带辐合带的位置和强度;该气候异常信号通过大气遥相关机制传递至南半球中高纬度地区,引发区域大气环流和风场结构显著调整[26-27]。2015年7月—2016年4月,相比于正常年份,0~100 m光照强度未发生显著增加(图7b),混合层深度也未见加深(图 8c),但埃克曼抽吸速率(EPV)显著增加,最大值达到0.76×10⁻⁵ m·s-1(图8d),表明风驱动力作用显著增强。EPV的增强进一步导致温跃层深度明显变浅(<200 m, 图8b),即温跃层抬升。温跃层抬升有利于下层冷水和营养盐向上输送,强化了上升流活动,所以2015年研究区域0~100 m水温明显较低(图7c)。上升流将深层低温、高营养盐的海水输送至真光层[26-27],引起了夏季浮游植物爆发强度增大和持续时间增加(图5),改变了该海域生物地球化学循环的季节特征。与以往研究[18,25,27]对比发现,本次厄尔尼诺事件对南大洋-印度洋扇区的影响,凸显了中高纬度海洋生态系统对强气候事件响应的敏感性。尽管营养盐供应并非该区域浮游植物生长的主要限制因子(该海域表层硝酸盐含量终年维持较高水平),但南大洋高营养盐、低叶绿素区域普遍存在铁等痕量元素限制[28],因此夏季浮游植物通常无法将硝酸盐彻底消耗。但强上升流引起的物理输送与混合在浮游植物年度动态中仍起着关键作用,这一认识为理解未来强气候事件频发下的南大洋生态响应机制提供了参考。
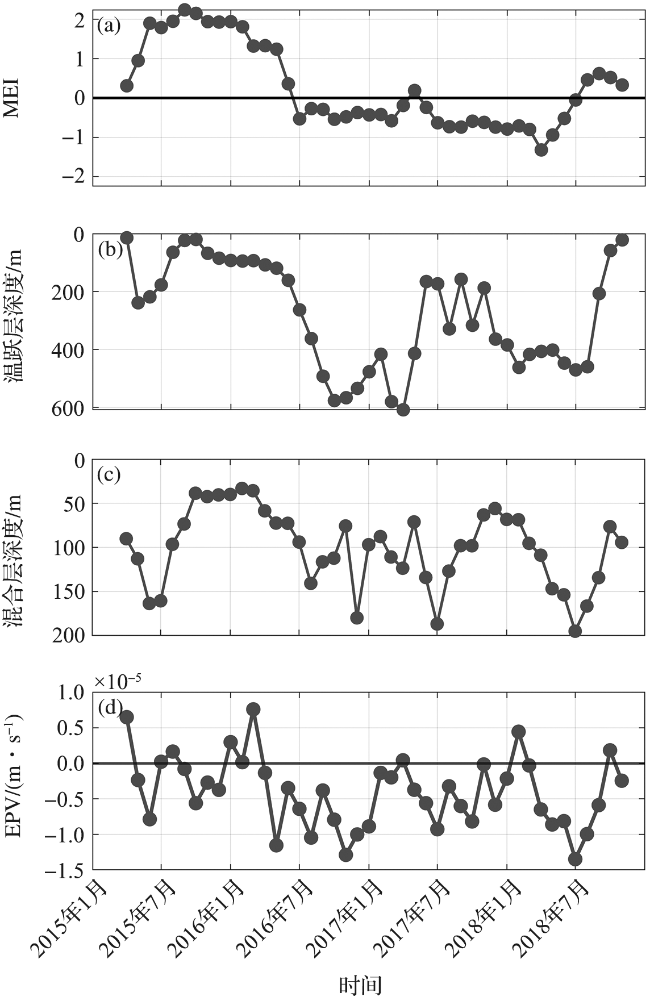
图8 2015年1月—2018年12月ENSO指数(MEI)(a)以及研究区域温跃层深度(b)、混合层深度(c)和埃克曼抽吸速率(EPV)(d)的变化

Fig.8 Time series of the ENSO index (MEI) (a) and the corresponding thermocline depth (b), mixed layer depth (c) and Ekman pumping velocity (EPV) (d) in the study region from January 2015 to December 2018

本研究仍存在若干关键问题有待进一步探索,例如目前对浮游植物生理状态(如Chl a与Cphyto的解耦机制)、种群结构演变及其对碳输出的实际贡献仍缺乏系统评估;不同厄尔尼诺事件类型(如中部型与东部型)对南大洋不同区域的影响是否存在异质性尚不明确。未来应继续拓展BGC-Argo等原位观测网络,结合高分辨率生态模型,重点解析多尺度物理过程与生物地球化学循环的耦合机制,以提升对南大洋碳汇功能的预测能力及对气候反馈效应的评估精度。

5 小结

本文基于BGC-Argo浮标、卫星遥感及再分析数据,系统分析了南大洋-印度洋扇区叶绿素a(Chl a)与浮游植物碳生物量(Cphyto)的垂向季节变化特征、驱动机制及其对2015/2016年强厄尔尼诺事件的响应。
研究揭示了该区域浮游植物垂向季节演变规律及其环境影响机制。结果表明,浮游植物主要分布于0~100 m深度层,除冬季外,10~100 m层存在显著的次表层叶绿素最大值层(SCML),其形成与消退具有明显季节性。夏季,充足的光照与适宜的温度条件共同促进浮游植物生长,SCML结构显著,Cphyto达到全年最高值;冬季,光照减弱和混合层加深导致10~100 m 层的SCML消失,Chl a与Cphyto出现解耦现象。
2015/2016年强厄尔尼诺事件通过增强区域西风、引起埃克曼抽吸和温跃层抬升,促进了深层营养盐向表层输送,从而延长了浮游植物藻华的物理-生物耦合过程。
[1]
DEPPELER S L, DAVIDSON A T. Southern Ocean phyto-plankton in a changing climate[J]. Frontiers in Marine Science, 2017, 4: 40.

[2]
WIRTZ K, SMITH S L, MATHIS M, et al. Vertically migrating phytoplankton fuel high oceanic primary production[J]. Nature Climate Change, 2022, 12(8): 750-756.

DOI

[3]
谭亦杨, 白雁, 李腾, 等. 基于时序特征参数的南极磷虾栖息地适宜性模型及长时序变化分析——以宇航员海与迪尔维尔海为例[J]. 海洋学研究, 2024, 42(4):43-57.

DOI

TAN Y Y, BAI Y, LI T, et al. Antarctic krill habitat suitability modeling based on timing parameters and long-term change analysis: A case study in the Cosmonauts Sea and D’Urville Sea[J]. Journal of Marine Sciences, 2024, 42(4): 43-57.

DOI

[4]
GRUBER N, LANDSCHÜTZER P, LOVENDUSKI N S. The variable Southern Ocean carbon sink[J]. Annual Review of Marine Science, 2019, 11: 159-186.

DOI PMID

[5]
THOMALLA S J, NICHOLSON S A, RYAN-KEOGH T J, et al. Widespread changes in Southern Ocean phytoplankton blooms linked to climate drivers[J]. Nature Climate Change, 2023, 13(9): 975-984.

DOI

[6]
RYAN-KEOGH T J, THOMALLA S J, MONTEIRO P M S, et al. Multidecadal trend of increasing iron stress in Southern Ocean phytoplankton[J]. Science, 2023, 379(6634): 834-840.

DOI

[7]
ARTEAGA L A, BOSS E, BEHRENFELD M J, et al. Seasonal modulation of phytoplankton biomass in the Southern Ocean[J]. Nature Communications, 2020, 11: 5364.

DOI PMID

[8]
TERRATS L, CLAUSTRE H, BRIGGS N, et al. BioGeo-Chemical-Argo floats reveal stark latitudinal gradient in the Southern Ocean deep carbon flux driven by phytoplankton community composition[J]. Global Biogeochemical Cycles, 2023, 37(11): e2022GB007624.

[9]
SU J Y, STRUTTON P G, SCHALLENBERG C. The subsurface biological structure of Southern Ocean eddies revealed by BGC-Argo floats[J]. Journal of Marine Systems, 2021, 220: 103569.

DOI

[10]
BALDRY K, STRUTTON P G, HILL N A, et al. Subsurface chlorophyll-a maxima in the Southern Ocean[J]. Frontiers in Marine Science, 2020, 7: 671.

DOI

[11]
BOYD P W, ANTOINE D, BALDRY K, et al. Controls on polar Southern Ocean deep chlorophyll maxima: Viewpoints from multiple observational platforms[J]. Global Biogeo-chemical Cycles, 2024, 38(3): e2023GB008033.

[12]
GEORGE J V, NAIK R K, ANILKUMAR N, et al. Physical control on the inter-annual variability of summer dissolved nutrient concentration and phytoplankton biomass in the Indian sector of the Southern Ocean[J]. Oceanologia, 2022, 64(4): 675-693.

DOI

[13]
TAKAHASHI K D, MAKABE R, TAKAO S, et al. Phytoplankton and ice-algal communities in the seasonal ice zone during January (Southern Ocean, Indian sector)[J]. Journal of Oceanography, 2022, 78(5): 409-424.

DOI

[14]
LINIGER G, MOREAU S, LANNUZEL D, et al. Southern Ocean carbon export revealed by backscatter and oxygen measurements from BGC-Argo floats[J]. Global Biogeo-chemical Cycles, 2025, 39(4): e2024GB008193.

[15]
ROGERS A D, FRINAULT B A V, BARNES D K A, et al. Antarctic futures: An assessment of climate-driven changes in ecosystem structure, function, and service provisioning in the Southern Ocean[J]. Annual Review of Marine Science, 2020, 12: 87-120.

DOI PMID

[16]
MORLEY S A, ABELE D, BARNES D K A, et al. Global drivers on Southern Ocean ecosystems: Changing physical environments and anthropogenic pressures in an earth system[J]. Frontiers in Marine Science, 2020, 7: 547188.

DOI

[17]
XING X G, BOSS E, CHEN S L, et al. Seasonal and daily-scale photoacclimation modulating the phytoplankton chlorophyll-carbon coupling relationship in the mid-latitude northwest Pacific[J]. Journal of Geophysical Research: Oceans, 2021, 126(10): e2021JC017717.

[18]
HU Q W, CHEN X Y, HE X Q, et al. Effect of El Niño-related warming on phytoplankton’s vertical distribution in the Arabian Sea[J]. Journal of Geophysical Research: Oceans, 2021, 126(11): e2021JC017882.

[19]
VERESHCHAKA A L, LUNINA A A, MIKAELYAN A S. Surface chlorophyll concentration as a mesoplankton biomass assessment tool in the Southern Ocean region[J]. Global Ecology and Biogeography, 2022, 31(3): 405-424.

DOI

[20]
ZHANG K, ZHANG Z R, HE J F, et al. Re-evaluating winter carbon sink in Southern Ocean by recovering MODIS-Aqua chlorophyll-a product at high solar zenith angles[J]. ISPRS Journal of Photogrammetry and Remote Sensing, 2024, 218: 588-599.

DOI

[21]
HE Q Y, ZHAN H G, CAI S Q, et al. Eddy-induced near-surface chlorophyll anomalies in the subtropical gyres: Biomass or physiology[J]. Geophysical Research Letters, 2021, 48(7): e2020GL091975.

[22]
赵跃然, 范高晶, 吴嘉琪, 等. 南乔治亚岛海域浮游植物季节性旺发特征与POC输出通量:基于BGC-Argo和卫星遥感观测[J]. 海洋学研究, 2023, 41(4):1-11.

DOI

ZHAO Y R, FAN G J, WU J Q, et al. The seasonal blooming characteristics of phytoplankton and POC export flux in the waters around South Georgia Island: Based on BGC-Argo and satellite remote sensing observations[J]. Journal of Marine Sciences, 2023, 41(4): 1-11.

DOI

[23]
TAGLIABUE A, SALLÉE J B, BOWIE A R, et al. Surface-water iron supplies in the Southern Ocean sustained by deep winter mixing[J]. Nature Geoscience, 2014, 7(4): 314-320.

DOI

[24]
薛文璟, 余锦华, 陈林. 2016与1998年春季北大西洋海表温度异常的差异及成因[J]. 热带海洋学报, 2020, 39(3):19-30.

DOI

XUE W J, YU J H, CHEN L. Differences of sea surface temperature anomalies in the North Atlantic in springs of 1998 and 2016 and their causes[J]. Journal of Tropical Oceanography, 2020, 39(3): 19-30.

DOI

[25]
吴国丽, 李思航, 刘子洲, 等. 2015/2016年超强厄尔尼诺期间热带西太平洋海洋环流变化特征[J]. 海洋科学, 2020, 44(1):8-18.

WU G L, LI S H, LIU Z Z, et al. Variations in the tropical Western Pacific gyre during the 2015/2016 super El Niño event[J]. Marine Sciences, 2020, 44(1): 8-18.

[26]
CIASTO L M, SIMPKINS G R, ENGLAND M H. Teleconnections between tropical Pacific SST anomalies and extratropical southern hemisphere climate[J]. Journal of Climate, 2015, 28(1): 56-65.

DOI

[27]
SHUNMUGAPANDI R, GEDAM S, INAMDAR A B. Impact of 2015-2016 El Niño on phytoplankton size class distribution during the summer and winter monsoon in the Arabian Sea[J]. International Journal of Remote Sensing, 2024, 45(23): 9017-9032.

DOI

[28]
BOYD P W, ELLWOOD M J. The biogeochemical cycle of iron in the ocean[J]. Nature Geoscience, 2010, 3(10): 675-682.

DOI

Outlines

/

〈 〉