Ecotoxicological effects of mercury pollution on marine organisms under global climate change

  • CHEN Yao , 1, 2, * ,
  • SU Rong 1, 2 ,
  • WANG Fangzhou 1, 2
Expand
  • 1 Xiamen Marine Center, MNR, Xiamen 361101, China
  • 2 Joint Research Center for Marine Engineering Ecological Safety, Xiamen 361008, China

Received date: 2026-03-03

  Revised date: 2026-04-20

  Online published: 2026-06-25

Abstract

Under global climate change, the combined effects of ocean acidification and warming on mercury (Hg) ecotoxicity and their underlying mechanisms have become a research focus in environmental science. This paper has comprehensively reviewed existing studies and analyzed the interactive effects of acidification and warming on Hg bioaccumulation, toxicity effects, and biological responses. The key findings reveal that ocean acidification primarily mitigates Hg toxicity by inhibiting Hg bioaccumulation and inducing energy compensation and stress responses in organisms, demonstrating their antagonistic interaction. In contrast, warming exerts a synergistic effect with Hg pollution, i.e., exacerbating Hg toxicity by increasing metabolic rates, promoting Hg accumulation, and inducing oxidative damage. Under the more realistic scenario of combined acidification and warming, the inhibitory effect of acidification on Hg accumulation is partially offset, while immune defense downregulation and reproductive damage are intensified, ultimately leading to an overall enhancement of Hg toxicity. These findings suggest that assessments based solely on single climate stressors (acidification or warming) may substantially underestimate the long-term ecological risks of Hg pollution in marine ecosystems. Such underestimation stems from the neglect of warming’s counteraction on acidification and the dual energy demand arising from combined acidification and warming exceeding an organism’s compensatory capacity. Future research should prioritize integrated assessments across multi-stressors, multigenerational exposure, and ecosystem levels to reveal the complex mechanisms of Hg toxicity under global climate change, provide a scientific basis for developing accurate risk management strategies.

Cite this article

CHEN Yao , SU Rong , WANG Fangzhou . Ecotoxicological effects of mercury pollution on marine organisms under global climate change[J]. Journal of Marine Sciences, 2026 , 44(2) : 85 -92 . DOI: 10.3969/j.issn.1001-909X.2026.02.009

0 引言

汞作为毒性最强的金属污染物之一,已被全球许多国家(包括中国)及主要国际机构/组织列为优先控制污染物。环境中汞的来源有自然来源和人为来源两种。其中,自然来源主要有火山喷发、地热释放以及历史沉积汞在沉积物和海水中的再释放;人为来源则涵盖化石燃料燃烧、油漆制造、燃煤发电、采矿和冶炼等活动。据联合国环境规划署估算,全球人为汞年均排放量约为2 000 t,其中大量汞经多种途径汇入海洋,造成日趋严峻的海洋汞污染。与此同时,人类活动持续排放的二氧化碳(CO2)正引起海水pH降低和温度上升,即海洋酸化和暖化。在全球气候变化与人为污染叠加的背景下,海洋生物正面临多重环境胁迫,而海洋酸化、暖化和汞污染三者之间的耦合效应,已成为当前海洋生态毒理学研究的焦点。研究表明,全球气候变化显著影响着海洋中汞的迁移转化、生物可利用性及其在营养级间的传递效率(图1)[1],使得汞污染对海洋生态系统的长期影响变得尤为复杂[2]。此外,最近的Meta分析进一步揭示:在酸化和暖化的复合胁迫下,海洋生物的汞毒性效应往往呈增加趋势[3]。
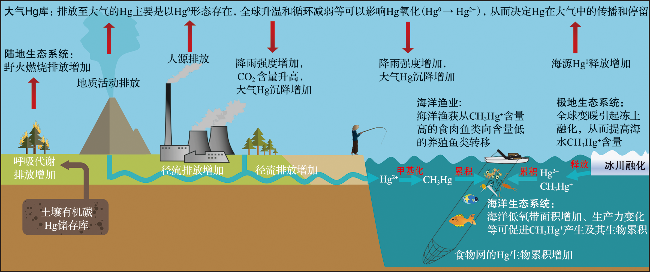
图1 气候变化下汞污染的全球循环

(图件改绘自文献[1]。)

Fig.1 The global cycle of mercury pollution under climate change

(The figure is redrawn from reference [1].)

本文主要综述了海洋酸化和暖化情境下汞污染的生态毒理效应,重点探讨了汞对桡足类、鱼类等关键海洋生物重要生命过程(包括生长、发育、繁殖等表型参数)的影响。研究结果可为精准评估全球变化背景下汞污染的海洋生态效应提供科学依据,也可为海洋环境保护政策制定与实施提供数据支撑。

1 海洋汞污染

汞(Mercury,Hg)俗称“水银”,为一种全球性污染物,以其强毒性、持久性和远距离迁移能力,对生态系统与人类健康构成持续威胁。为应对这一严峻挑战,具有法律约束力的国际汞管控公约——《水俣公约》已于2017年8月正式生效。该公约旨在全球范围内控制和削减汞及其化合物的生产、使用和排放,降低汞污染对生态环境和人体健康的危害。
工业革命前(公元1750年前),环境中的汞循环基本遵循自然演化规律,来源主要与火山喷发和地质活动有关[4]。当前,环境中的汞来源主要为人为来源,大气中人为汞排放量较历史水平(公元1450年前)增加了约450%;全球人为大气汞排放量估计为2 500±500 Mg/a,其中手工业和小规模金矿开采(年排放量为675~1 000 Mg)是最大排放源[5]。海洋在汞的全球循环中扮演着双重角色,既是大气沉降与河流输入的汇集和储存库,也是向大气再释放汞的源区,发挥着核心调节作用。据估算,现今海洋中的汞总量已达313 Gg,其中表层海水的汞含量较工业革命前增加了230%,深层海水中的汞含量增加了12%~25%[5]。开阔大洋的汞主要来源于大气输入,气态元素汞(Hg0)在氧化作用下转化为二价汞(Hg2+),以雨雪或颗粒物的形式沉降进入海洋,海洋表面也可直接吸收气态元素汞[6]。对于近海海域而言,河流输入则是最主要的汞来源,年输送量达1 000 Mg,是大气沉降量的3倍[7]。联合国环境规划署评估指出,全球表层海水中汞的平均含量已达工业革命前的2.3倍,且预计在未来几十年会持续上升[8]。
我国近海海域的不同介质(如海水和沉积物)中汞含量严重超标。LIU等[9]发现,1984—2013年,以河流输运等途径向邻近海域(渤海、黄海、东海和南海)排放的总汞量从每年110 t持续攀升至250 t。GAO等[10]综述了中国渤海湾中汞等金属的污染状况,指出:一些高污染区海水的汞质量浓度高达2.59 μg/L,远超过四类海水水质标准(汞质量浓度上限为0.5 μg/L[11])。福建三沙湾的金属污染调查显示,海水的汞质量浓度为0.28~7.86 μg/L,其中盐田港和南塘港的汞含量超过四类海水水质标准近16倍,具有较高的生态风险[12]。2013年和2014年,渤、黄海海域有65.22%的沉积物站位具有极高的汞污染风险[13]。2018年,渤海沉积物的最大汞含量为0.75 mg/kg,黄海沉积物中为0.43 mg/kg,均超出背景值25倍以上[14]。因此,汞污染,尤其是在中国近海区域,是当前海洋环境面临的严峻挑战,其对生态系统健康及公共安全构成长期潜在威胁。
汞具有很强的亲巯基性,能够与细胞内富含巯基的蛋白质等生物大分子结合,破坏其结构和功能,引起氧化胁迫、生物大分子损伤、细胞代谢紊乱等一系列毒性事件,最终表现出神经毒性、发育毒性等多种有害生物学效应[15]。研究表明,即使在环境相关浓度下,汞也能显著影响海洋生物的关键生命参数。例如,低至0.5 μg/L的海水汞质量浓度即可显著抑制桡足类日本虎斑猛水蚤(Tigriopus japonicus)的繁殖力[16];在多世代持续暴露条件下,环境相关浓度下的汞污染(1 μg/L和2.5 μg/L)可诱导桡足类安氏伪镖水蚤(Pseudodiaptomus annandalei)产生氧化胁迫、机体稳态失衡及谷胱甘肽代谢紊乱等生理毒性响应,进而显著抑制其生长发育和繁殖能力[15]。现场观测也表明:汞污染(海水中汞质量浓度超过0.066 μg/L)可引起海区浮游动物群落结构发生显著变化,种类多样性明显降低[17]。鉴于中国近海诸多海域海水中汞的质量浓度远超0.066 μg/L[10,12],近海浮游动物群落正面临严峻的生态风险。
更令人担忧的是,汞具有显著的生物放大效应,能通过食物链累积与传递,最终危及人类健康。据研究:香港人均每周鱼类摄入量约为175 g,相应的每周汞摄入量可达20 μg;该研究同时显示,高鱼类摄入人群(每周食用鱼类≥四餐),其头发中的汞含量为4.07 mg/kg,而低鱼类摄入人群的头发中汞含量为2.56 mg/kg;前者发生生育力降低的风险约为后者的2倍[18]。综上,近海汞污染已是我国亟待解决的严峻环境问题,不仅影响到近海生态系统的结构和功能,还对人民的身体健康与生命安全构成了重大威胁。

2 全球气候变化加剧汞污染的生物效应

在全球气候变化背景下,汞污染的生态毒性效应正经历着深刻变化。人类活动引起的CO2持续排放,一方面驱动全球变暖并引发海洋表层海水温度的升高(海洋暖化);另一方面,海洋作为CO2重要的汇,每年可吸收约三分之一人为排放的CO2,引发海水碳酸盐体系变化,导致海洋酸化。根据政府间气候变化专门委员会(IPCC)的最新评估,至本世纪末,表层海水CO2分压(pCO2)将由当前水平约40.53 Pa上升至约101.32 Pa,这会导致全球海洋表层海水平均pH值下降0.3~0.5个单位,温度上升2.6~4.8 ℃[19]。值得注意的是,由于深层酸化海水的上涌、高强度的异养、呼吸作用等影响,近海海域已形成许多“低pH值热点区域”,生活在其中的生物正提前暴露于原本预计本世纪末才会普遍出现的海水酸化水平[20-21]。此外,近海海域受人类活动(如核电厂的温排水)和极端气候事件(如海洋热浪)的影响更为直接和剧烈,其海水表层温度上升幅度高于开阔大洋。因此,现实海洋环境中,海洋生物已经面临着酸化、暖化和汞污染的多重环境胁迫。鉴于汞污染已是全球性的严峻环境问题,深入探究其在全球气候变化背景下的生物效应与生物适应策略,已成为环境科学与生态毒理学领域亟待解决的关键科学问题。
海洋酸化会引起海水碳酸盐体系变化,特别是海水中H+含量和pCO2的增加,构成了一种持续性的基础环境胁迫。为维持体内酸碱平衡(应对酸中毒或高碳酸血症),生物需要调动能量进行调节,从而导致用于生长、发育、繁殖或应对其他胁迫的能量被重新分配,即引发“能量权衡”[22]。这种生理调整会改变生物对汞等额外环境胁迫的敏感性。研究表明,酸化与汞污染的联合效应常表现为拮抗作用。早在2017年,LI等[23]研究发现,多世代暴露条件下,海洋酸化(海水pCO2 为101.32 Pa,本世纪末的平均酸化水平)会显著减少汞在日本虎斑猛水蚤体内的累积量(可能原因是酸化条件下H+与汞离子竞争生物膜表面的结合位点以及pH值降低引起生物膜通透性下降,从而减少细胞对汞的内化),最终减轻汞污染的繁殖毒性;蛋白质组学分析进一步揭示:酸化可诱导日本虎斑猛水蚤体内启动溶酶体自噬机制,清除氧化受损的蛋白质和酶等,从而减轻汞对该桡足类的毒性效应[24]。该课题组还发现,1 μg/L和2.5 μg/L的汞污染条件下,海洋酸化(海水pCO2 为101.32 Pa)均显著降低汞在安氏伪镖水蚤体内的累积量,进而缓解汞污染对其的毒性效应;类似地,蛋白质组学分析表明,安氏伪镖水蚤在应对酸化和汞污染联合胁迫时启动了更多与应激相关的防御途径,如碳水化合物代谢、糖蛋白水解以及氧化防御的上调,从而减轻了汞对该桡足类发育和繁殖的抑制作用[15]。此外,SAMPAIO等[25]的研究表明,将大西洋白姑鱼(Argyrosomus regius)置于酸化和汞污染环境中连续暴露30 d后,酸化会显著降低汞在该鱼类体内的累积量。在海洋生物的环境因子联合效应中,海洋酸化和汞污染存在拮抗作用,这与酸化和其他金属(如铜、镉)的联合效应不一致。例如,酸化可显著增强铜对海洋双壳类菲律宾蛤仔(Ruditapes philippinarum)[26]和头足类短蛸(Amphioctopus fangsiao)[27]的毒性效应,主要机制为酸化显著提高了海水中自由态铜离子的浓度[28]。综上,酸化可通过改变生物膜通透性及竞争结合位点,减少汞的生物累积量;同时,酸化会诱导能量补偿与防御机制,进而减轻汞污染的毒性效应。
与酸化不同,海洋暖化可通过影响生物的基础代谢率、蛋白质功能及能量预算,直接改变生物对汞的累积和响应[29-32]。BAI等[29]研究发现,多世代暴露条件下,海洋暖化(升温4 ℃,本世纪末的平均暖化水平)显著增加了日本虎斑猛水蚤体内汞的累积量,诱发机体氧化损伤,并进一步加剧了对繁殖能力的抑制效应。其他学者也发现,暖化会显著提高汞在海洋鱼类体内的累积[30-32]。例如,MAULVAULT等[32]发现:当海水温度从18 ℃上升至22 ℃时,欧洲鲈(Dicentrarchus labrax)幼鱼三种组织(大脑、肝脏和肌肉)中的汞含量均显著升高;其中,大脑组织中的汞含量从6.2 mg/kg显著增加至8.1 mg/kg,可能原因是暖化改变了鱼类的代谢速率。值得注意的是,SCHARTUP等[33]通过模型估算的结果表明:到2030年,海水温度升高将使大西洋蓝鳍金枪鱼(Thunnus thynnus)组织中的甲基汞浓度增加56%,从而加剧人类健康风险。
当前,针对海洋酸化和暖化复合作用这一更具现实意义的气候变化情景研究仍相对匮乏。现有的有限研究表明:一方面,酸化和暖化对大西洋白姑鱼体内的汞累积及氧化应激反应表现出拮抗效应[25];另一方面,最新的多世代研究表明,酸化和暖化的复合作用会显著增加日本虎斑猛水蚤体内甲基汞的累积,并引发更严重的繁殖损伤,其作用机制主要涉及机体免疫防御和能量代谢的受抑,同时伴随繁殖相关基因表达下调[34]。这提示,酸化和暖化之间可能存在相互作用,而暖化起主导作用,从而加剧汞污染的毒性效应。然而,现有研究结果的差异也可能源于物种特异性、暴露时长(急性vs多世代)以及生命阶段的不同等因素。由此可见,海洋酸化与暖化的复合作用对汞污染生态毒性的影响复杂,取决于多种因素,未来需加强多因子、多世代研究,以准确评估全球气候变化背景下汞污染的生态风险。

3 全球气候变化加剧汞毒性效应的作用机制

在全球气候变化背景下,汞污染对海洋生物的生态毒性效应正经历深刻变化,揭示其背后的分子机理是准确预测与评估生态风险、制定有效减缓策略的关键。现有研究表明,全球气候变化主要通过调节汞的生物累积、改变生物的能量配置策略、干扰解毒过程与应激防御等多重途径,影响汞对海洋生物的毒性效应(图2)。具体而言,海洋酸化主要通过降低汞的生物累积量、提高能量代谢以及增强解毒与防御能力,从而减轻汞污染对生物的毒性效应;而海洋暖化则相反,会增加汞的生物累积量、降低解毒与防御能力,进而加剧汞的毒性效应。当酸化和暖化同时发生时,暖化通常起主导作用,整体表现为毒性效应加剧。
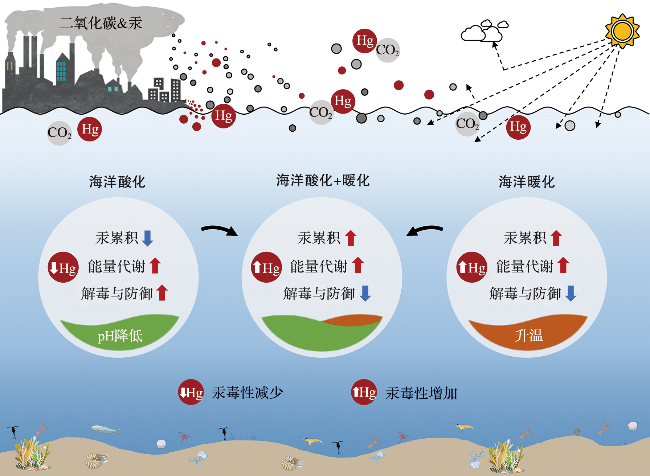
图2 海洋酸化和暖化影响汞毒性效应的机理

Fig.2 The mechanisms underlying the effect of ocean acidification and warming on mercury toxicity

在酸化条件下,海水pH值下降、H+浓度升高。由于H+与Hg2+在生物细胞膜表面的巯基、羧基等配体位点发生竞争结合,高浓度H+可优先占据部分膜结合位,进而抑制Hg2+经鳃、体表等界面的被动扩散与主动转运过程;同时,海水酸化还可改变生物膜脂质双分子层的结构和通透性,进而调控汞离子的跨膜运输效率。上述机制解释了为何在多种桡足类和鱼类的研究中,单一酸化胁迫下生物体内汞累积量普遍呈下降趋势[15,23,25]。相较之下,海洋暖化通常会加快生物的基础代谢速率,促进生物对汞的累积,进而加剧汞对桡足类、鱼类等生物的毒性效应[29-32]。酸化和暖化复合胁迫对汞累积的影响表现出相互作用。例如,暖化可通过提高代谢需求,部分抵消酸化对汞累积的抑制作用,最终使复合胁迫显著加剧汞对日本虎斑猛水蚤的繁殖损伤[34]。值得一提的是,海水中汞的主要存在形态是无机汞(如氯化汞),其含量并不会随海水pH值、温度等环境因子的变化而发生显著改变。因此,在海洋酸化和暖化下,生物体内汞累积量的变化,更多归因于生物体本身的生理响应,而非水体中汞的赋存形态转变。
气候变化相关胁迫因子会驱动生物启动生理调节机制,对体内有限的能量资源进行重新分配。当生物将更多能量用于应对酸化或暖化引发的生理胁迫时,可用于抵抗其他环境胁迫的能量配额便会相应降低。这种“能量权衡”是理解生物对汞污染敏感性变化的关键机制。例如,在酸化与汞污染联合胁迫下,日本虎斑猛水蚤和安氏伪镖水蚤均启动了补偿机制以降低汞的毒性效应,包括提高能量合成、增强应激防御反应[15,23-24]。海洋暖化胁迫可提高生物代谢速率,导致能量需求增加,同时加剧线粒体呼吸作用,诱导大量活性氧生成,汞本身也是强氧化胁迫诱导因子,二者的协同作用会引发脂质过氧化与蛋白质损伤。此时,生物需要上调抗氧化防御系统(如超氧化物歧化酶、过氧化氢酶),而该过程进一步消耗能量,加剧能量短缺与细胞损伤[35]。当酸化和暖化同时存在时,生物在应对汞污染时,需同时应对酸碱调节和高温代谢升高的双重能量成本。组学研究表明,在此复合胁迫下,与能量代谢(如三羧酸循环)相关的基因表达与酶活性常受到抑制,提示细胞的能量生成系统已不堪重负;同时,免疫防御与胁迫应答相关通路也可能因能量限制而下调[34]。上述发现进一步证实,酸化和暖化的复合作用可显著加剧汞对海洋桡足类(如日本虎斑猛水蚤)的繁殖毒性[34]。

4 结论与展望

全球气候变化与汞污染的交互作用,正在显著加剧海洋生态系统的环境风险。现有研究表明,中国近海等海域汞污染问题尤为严峻。即使在环境相关浓度下,汞仍可通过抑制桡足类、鱼类等关键生物的生长与繁殖,对其种群动态与群落结构构成潜在威胁;同时,汞可沿食物链富集与传递,最终影响人类健康。作为全球气候变化的核心胁迫因子,海洋酸化与暖化以不同机制调控汞污染的生态毒性:酸化通过降低生物膜通透性、诱导能量重分配与应激补偿,降低汞的生物累积与毒性效应,呈拮抗作用;暖化则因代谢加速而促进汞的累积,诱发氧化损伤与能量耗竭,呈协同效应。在酸化与暖化复合胁迫下,暖化可部分抵消酸化对汞累积的抑制效应,但复合胁迫带来的能量成本(酸碱平衡维持与代谢增加)显著超出生物代偿能力,导致免疫反应抑制、繁殖损伤加剧,整体毒性效应高于单一胁迫情景。上述发现表明,若仅基于酸化或暖化单一气候变化因子评估汞污染风险,将因忽略酸化对暖化的抵消效应以及生物能量代偿失效,从而严重低估其复合生态后果。尽管当前的研究在机制解析方面已取得一定进展,但对多胁迫因子在真实海洋环境中的时空耦合效应、跨世代传递规律及生态系统尺度连锁反应的认知仍十分有限。
为应对全球气候变化背景下海洋汞污染评估与管理的科学挑战,未来研究亟需在以下几个方向实现突破:
1)多世代与进化适应研究。开展跨世代暴露实验,揭示海洋生物在酸化、暖化与汞复合胁迫下的适应性进化潜力、表观遗传修饰特征及种群遗传结构变化,为长期环境选择压力下的种群存续力预测提供科学依据。
2)多物种与食物网整合。从单一物种效应拓展至多营养级生物互作网络,阐明气候变化背景下汞在营养级间生物放大效率的变化规律,重点关注浮游植物-浮游动物-游泳生物链中的传递动力学。
3)生态系统水平验证。结合中宇宙模拟与长期海洋生态监测,验证室内机制性发现在真实生态系统中的普适性,建立包含酸化、暖化及汞污染的多因子生态风险模型,定量评估从分子损伤到生态系统功能衰退的级联效应。
4)分子机制-生理响应-生态后果的关联解析。整合组学技术、生理生态学分析与种群模型模拟,构建从基因表达、代谢调控、个体适合度到种群动态与群落结构的全链条因果关系框架,突破机制研究与生态评估脱节的瓶颈。
5)区域差异化风险评估与政策支撑。针对中国近海等高风险海域,结合区域气候情景(如pH与温度联合变化趋势)与汞排放清单,研发基于多胁迫因子交互作用的风险预警指标,为海洋环境质量标准修订、污染物排放控制及气候变化适应策略提供精准科学依据。
综上所述,全球气候变化正将汞污染这一传统环境挑战推向更具复杂性与不确定性的风险新维度。在全球变化背景下,海洋热浪、极端酸化等气候极端事件正由偶发性灾害演变为常态化压力源,成为影响汞污染生态风险的关键要素,构建整合气候变化因子(包括海洋热浪、极端酸化)的汞污染风险评估体系势在必行。只有通过跨学科深度融合,在更贴近现实的时空尺度上系统揭示其复杂机理,才能为制定具有前瞻性和韧性的海洋环境保护策略、履行国际汞公约以及保障生态与食品安全提供坚实的科学基础。
[1]
KRABBENHOFT D P, SUNDERLAND E M. Global change and mercury[J]. Science, 2013, 341(6153): 1457-1458.

DOI

[2]
WANG Y J, WU P P, ZHANG Y X. Climate-driven changes of global marine mercury cycles in 2100[J]. Proceedings of the National Academy of Sciences of the United States of America, 2023, 120(2): e2202488120.

[3]
WEI H, XIE D M, WANG D Z, et al. A meta-analysis reveals global change stressors potentially aggravate mercury toxicity in marine biota[J]. Environmental Science & Technology, 2024, 58(1): 219-230.

DOI

[4]
PIRRONE N, CINNIRELLA S, FENG X, et al. Global mercury emissions to the atmosphere from anthropogenic and natural sources[J]. Atmospheric Chemistry and Physics, 2010, 10(13): 5951-5964.

[5]
OUTRIDGE P M, MASON R P, WANG F, et al. Updated global and oceanic mercury budgets for the United Nations Global Mercury Assessment 2018[J]. Environmental Science & Technology, 2018, 52(20): 11466-11477.

[6]
JISKRA M, HEIMBÜRGER-BOAVIDA L E, DESGRANGES M M, et al. Mercury stable isotopes constrain atmospheric sources to the ocean[J]. Nature, 2021, 597(7878): 678-682.

DOI

[7]
LIU M D, ZHANG Q R, MAAVARA T, et al. Rivers as the largest source of mercury to coastal oceans worldwide[J]. Nature Geoscience, 2021, 14(9): 672-677.

DOI

[8]
UNEP. An assessment report on issues of concern: Chemicals and waste issues posing risks to human health and the environment[R]. UNEP, 2020. https://wedocs.unep.org/handle/20.500.11822/33807.

[9]
LIU M D, CHEN L, WANG X J, et al. Mercury export from mainland China to adjacent seas and its influence on the marine mercury balance[J]. Environmental Science & Technology, 2016, 50(12): 6224-6232.

DOI

[10]
GAO X L, ZHOU F X, CHEN C A. Pollution status of the Bohai Sea: An overview of the environmental quality assess-ment related trace metals[J]. Environment International, 2014, 62: 12-30.

DOI

[11]
GB 3097—1997 海水水质标准[S].

GB 3097—1997 Sea water quality standard[S].

[12]
ZHOU S Y, KANG R, JI C N, et al. Heavy metal distribution, contamination and analysis of sources-Intertidal zones of Sandu Bay, Ningde, China[J]. Marine Pollution Bulletin, 2018, 135: 1138-1144.

DOI

[13]
XIAO C L, JIAN H M, CHEN L F, et al. Toxic metal pollution in the Yellow Sea and Bohai Sea, China: Distribution, controlling factors and potential risk[J]. Marine Pollution Bulletin, 2017, 119(1): 381-389.

DOI PMID

[14]
TIAN K, WU Q M, LIU P, et al. Ecological risk assessment of heavy metals in sediments and water from the coastal areas of the Bohai Sea and the Yellow Sea[J]. Environment International, 2020, 136: 105512.

DOI

[15]
WANG M H, CHEN J Y, LEE Y H, et al. Projected near-future ocean acidification decreases mercury toxicity in marine copepods[J]. Environmental Pollution, 2021, 284: 117140.

DOI

[16]
LI H Y, SHI L, WANG D Z, et al. Impacts of mercury exposure on life history traits of Tigriopus japonicus: Multigeneration effects and recovery from pollution[J]. Aquatic Toxicology, 2015, 166: 42-49.

DOI

[17]
CARDOSO P G, MARQUES S C, D’AMBROSIO M, et al. Changes in zooplankton communities along a mercury contamination gradient in a coastal lagoon (Ria de Aveiro, Portugal)[J]. Marine Pollution Bulletin, 2013, 76(1/2): 170-177.

DOI

[18]
DICKMAN M D, LEUNG K M C, KOO L C L. Mercury in human hair and fish: Is there a Hong Kong male subfertility connection?[J]. Marine Pollution Bulletin, 1999, 39(1-12): 352-356.

DOI

[19]
IPCC. Climate change 2021: The physical science basis[R]// Contribution of working group I to the sixth assessment report of the Intergovernmental Panel on Climate Change. Cambridge, United Kingdom: Cambridge University Press, 2021.

[20]
MELZNER F, MARK F C, SEIBEL B A, et al. Ocean acidification and coastal marine invertebrates: Tracking CO2 effects from seawater to the cell[J]. Annual Review of Marine Science, 2020, 12: 499-523.

DOI

[21]
ZHAO Y Y, LIU J, UTHAIPAN K, et al. Dynamics of inorganic carbon and pH in a large subtropical continental shelf system: Interaction between eutrophication, hypoxia, and ocean acidification[J]. Limnology and Oceanography, 2020, 65(6): 1359-1379.

DOI

[22]
WANG M H, JEONG C B, LEE Y H, et al. Effects of ocean acidification on copepods[J]. Aquatic Toxicology, 2018, 196: 17-24.

DOI PMID

[23]
LI Y, WANG W X, WANG M H. Alleviation of mercury toxicity to a marine copepod under multigenerational exposure by ocean acidification[J]. Scientific Reports, 2017, 7: 324.

DOI PMID

[24]
WANG M H, LEE J S, LI Y. Global proteome profiling of a marine copepod and the mitigating effect of ocean acidification on mercury toxicity after multigenerational exposure[J]. Environmental Science & Technology, 2017, 51(10): 5820-5831.

DOI

[25]
SAMPAIO E, LOPES A R, FRANCISCO S, et al. Ocean acidification dampens physiological stress response to warming and contamination in a commercially-important fish (Argyrosomus regius)[J]. Science of the Total Environment, 2018, 618: 388-398.

DOI

[26]
CAO R W, ZHANG Y L, JU Y H, et al. Exacerbation of copper pollution toxicity from ocean acidification: A comparative analysis of two bivalve species with distinct sensitivities[J]. Environmental Pollution, 2022, 293: 118525.

DOI

[27]
ZHENG J, LI Q, ZHENG X D. Ocean acidification increases copper accumulation and exacerbates copper toxicity in Amphioctopus fangsiao (Mollusca: Cephalopoda): A potential threat to seafood safety[J]. Science of the Total Environment, 2023, 891: 164473.

DOI

[28]
MILLERO F J, WOOSLEY R, DITROLIO B, et al. Effect of ocean acidification on the speciation of metals in seawater[J]. Oceanography, 2009, 22(4): 72-85.

DOI

[29]
BAI Z A, WANG N, KIM M S, et al. Physiological and molecular responses of a marine copepod under multigene-rational exposure to coastal warming and mercury at an environmentally realistic concentration[J]. Environmental Science & Technology Letters, 2023, 10(3): 240-246.

[30]
CAMACHO C, MAULVAULT A L, SANTOS M T, et al. Mercury in juvenile Solea senegalensis: Linking bioaccu-mulation, seafood safety, and neuro-oxidative responses under climate change-related stressors[J]. Applied Sciences, 2020, 10(6): 1993.

DOI

[31]
DIJKSTRA J A, BUCKMAN K L, WARD D, et al. Experimental and natural warming elevates mercury concentrations in estuarine fish[J]. Plos One, 2013, 8(3): e58401.

DOI

[32]
MAULVAULT A L, CUSTÓDIO A, ANACLETO P, et al. Bioaccumulation and elimination of mercury in juvenile seabass (Dicentrarchus labrax) in a warmer environment[J]. Environmental Research, 2016, 149: 77-85.

DOI PMID

[33]
SCHARTUP A T, THACKRAY C P, QURESHI A, et al. Climate change and overfishing increase neurotoxicant in marine predators[J]. Nature, 2019, 572(7771): 648-650.

DOI

[34]
LIN S R, ZHAO F K, CHEN Y, et al. Multigenerational impact of global change: Increased mercury toxicity in a marine copepod[J]. Journal of Hazardous Materials, 2025, 481: 136505.

DOI

[35]
BAI Z A, WANG M H. Warmer temperature increases mercury toxicity in a marine copepod[J]. Ecotoxicology and Environmental Safety, 2020, 201: 110861.

DOI

Outlines

/

〈 〉